《Nature Immunology》的一项小鼠研究用同一表位追踪克隆CD4 T细胞,发现抗原是否被注入肠上皮细胞胞质,而非抗原丰度,决定了黏膜CD4 T细胞反应的强度与记忆走向:胞质递送抗原诱导上皮内组织驻留记忆T细胞(TRM),膜相关抗原则使记忆细胞偏向GALT。该研究为黏膜疫苗设计提供了可检验的假说。
研究背景:同一细菌,不同抗原命运不同
黏膜免疫的一个基本问题是:T细胞如何识别病原体?CD4 T细胞识别的是MHC II类分子呈递的肽段。MHC II类分子主要表达在树突状细胞、巨噬细胞和B细胞等“专职”抗原呈递细胞上。
但屏障组织中的上皮细胞在感染时也能被诱导表达MHC II类分子,充当“非专职”抗原呈递细胞。它们缺乏共刺激分子,无法直接激活初始T细胞,却可能通过呈递病原体抗原来招募CD4 T细胞帮助。
此前研究已发现,小鼠肠道病原体柠檬酸杆菌(Citrobacter rodentium)选择性定植于远端结肠细胞,并依赖这些细胞表达MHC II来招募产生IL-22的CD4 T细胞。但一个关键问题尚未回答:细菌的哪些毒力蛋白驱动了CD4 T细胞反应?这些蛋白位于细菌表面、上皮细胞膜还是上皮细胞胞质,是否影响反应的质量和强度?
研究目的:把“抗原位置”变成唯一变量
研究团队的目标很明确:控制肽段与MHC II的亲和力一致,只改变抗原在宿主细胞中的亚细胞定位,观察克隆CD4 T细胞反应如何变化。
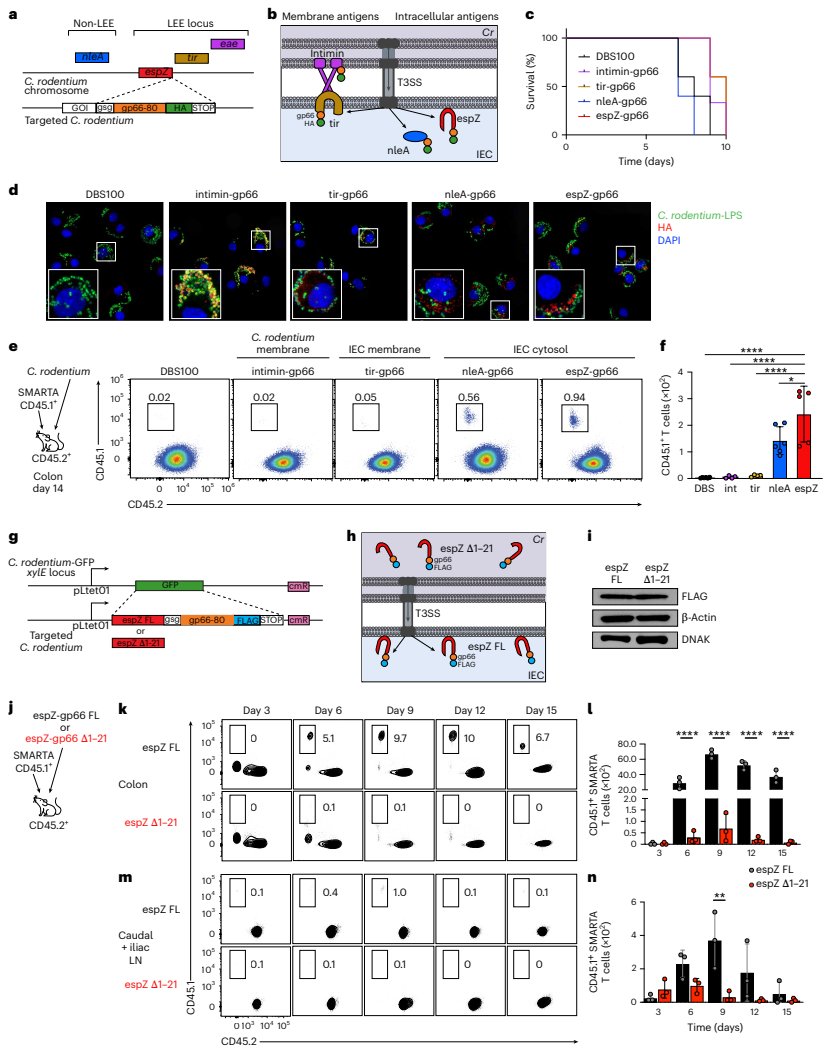
他们选择了淋巴细胞脉络丛脑膜炎病毒(LCMV)的gp66-80肽段,作为SMARTA TCR转基因CD4 T细胞的已知抗原,将其融合到四种柠檬酸杆菌毒力蛋白上:位于细菌外膜的黏附素intimin、注入上皮细胞后定位在顶端膜的Tir、弥散分布于胞质的NleA,以及聚集在细菌附着处的胞质效应蛋白EspZ。
这样,同一表位被不同的“载体蛋白”带到不同位置,抗原剂量、肽段亲和力等变量被尽量控制。
研究方法(简要):工程菌株加克隆追踪
研究者构建了表达上述融合蛋白的等基因柠檬酸杆菌菌株,并验证其毒力与野生型相当。随后,他们将初始CD45.1+ SMARTA T细胞过继转移给小鼠,再用不同菌株感染,在感染后不同时间点回收结肠组织中的抗原特异性T细胞。
除了流式细胞术定量,研究还结合了免疫荧光、光片荧光显微镜三维成像、单细胞RNA测序、条件性敲除小鼠和LIPSTIC细胞互作标记等技术,从数量、空间位置和转录程序三个层面刻画T细胞反应。
核心发现:胞质递送抗原带来数量级差异
最直观的结果出现在感染后第14天。与intimin-gp66相比,nleA-gp66和espZ-gp66分别诱导了28倍和47倍的SMARTA T细胞在结肠中聚集。而定位在膜上的intimin和Tir,无论细菌表面还是上皮细胞膜,都未能诱导显著反应。
更关键的是,Tir虽然是检测到最丰富的蛋白,却几乎不引发反应;EspZ丰度较低,却诱导了强反应。这说明决定免疫原性的是抗原所在区室,而不是抗原量。
为了排除四种载体蛋白结构差异的干扰,研究者进一步比较了全长EspZ与缺失N端21个氨基酸的EspZ Δ1–21。两者蛋白和表位相同、丰度相当,仅能否被注入宿主胞质不同。结果,全长EspZ诱导的黏膜SMARTA T细胞比Δ1–21突变体高出100倍以上。
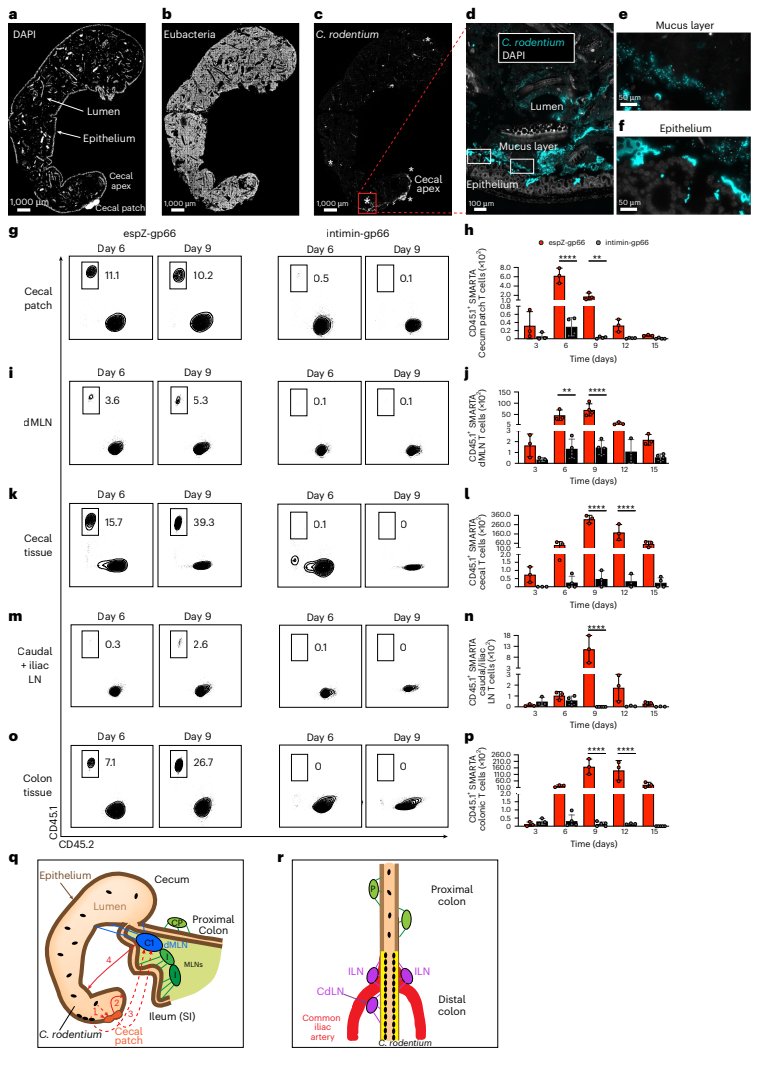
空间追踪显示,反应最早在盲肠引流淋巴结启动,随后随细菌向远端结肠扩散。而intimin-gp66在各部位、各时间点的反应都明显较弱,说明弱反应并非诱导部位不同所致。
创新点或突破:上皮细胞MHC II塑造记忆命运
研究进一步追问:这些T细胞后来去了哪里、变成了什么?
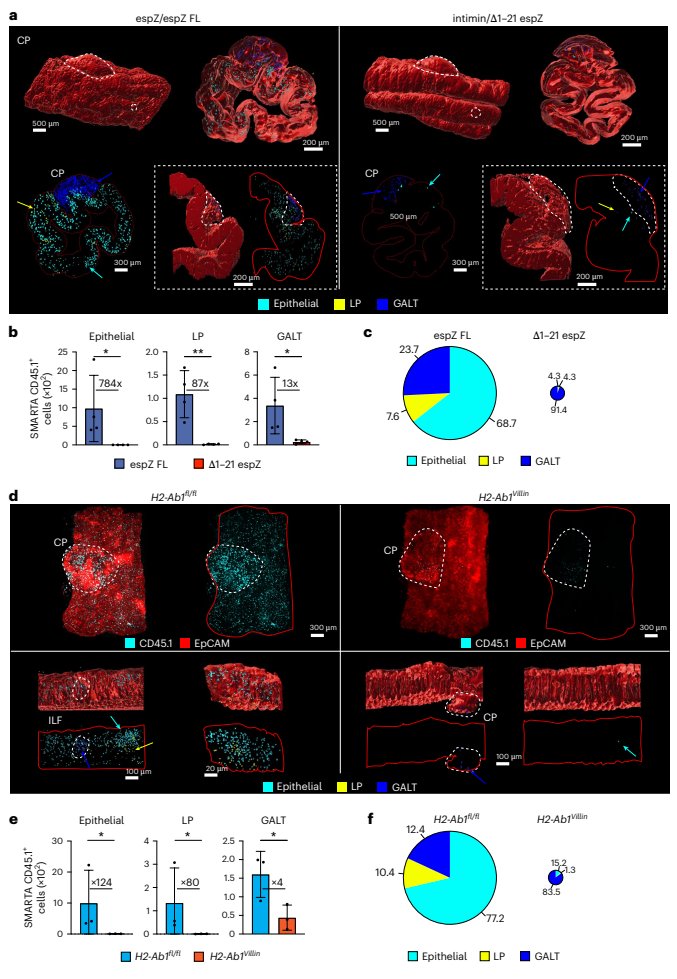
感染后第42天,即细菌清除三周后,胞质抗原诱导的SMARTA细胞大量存在于结肠上皮内,其中CD69+CD103+和CD69+CD103−的TRM表型占主导。而intimin-gp66诱导的记忆细胞极少,且90%以上局限于GALT。
通过上皮细胞特异性敲除MHC II的小鼠(H2-Ab1Villin),研究者证明上皮细胞MHC II对TRM的发育和维持都必不可少。记忆期诱导敲除同样会减少TRM数量,说明这种呈递不是一次性事件,而是持续维持着上皮内T细胞。
LIPSTIC标记实验进一步显示,感染后第42天,约79%的上皮内CD4 TRM与肠上皮细胞存在MHC II依赖的接触,而固有层T细胞的这类接触明显较少。
单细胞转录组则揭示,缺乏上皮抗原呈递时,记忆T细胞转向中央记忆样程序,表达Klf3、Klf4、Socs3、Ccr2等标志,而组织驻留相关转录本如Itgae、Jun、Ifng、Ccl5、Gzma则下调。
实际意义:为黏膜疫苗设计提供线索
这项研究的意义不止于解释一个细菌感染模型。它提出了一个可操作的免疫学原则:抗原进入上皮细胞胞质的途径,可能决定黏膜CD4 TRM的形成效率。
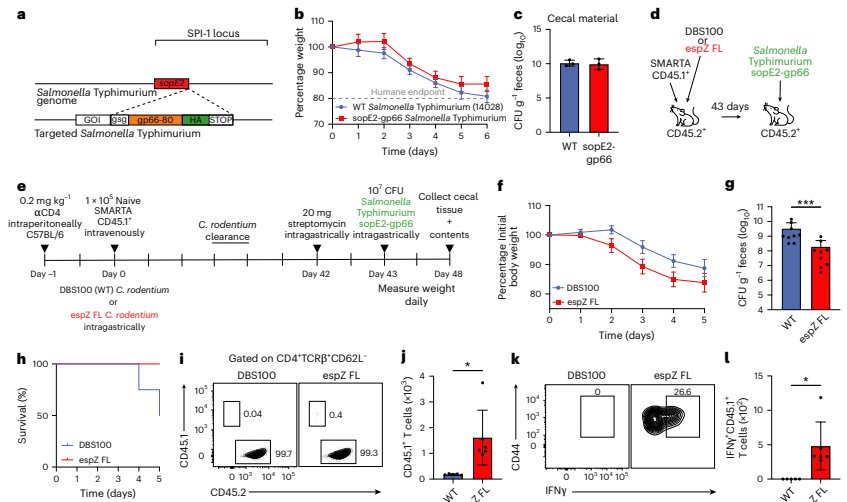
在异源再攻击实验中,经EspZ FL(胞质递送)致敏的小鼠,在随后用表达同一表位的鼠伤寒沙门菌攻击时,盲肠细菌负荷显著更低,5天内全部存活;而野生型致敏组仅有50%存活。回收的SMARTA细胞数量更多,再刺激后产生IFNγ的能力也更强。
研究者也指出了局限:这是小鼠模型,使用的是转基因克隆T细胞和工程菌株,人类黏膜免疫是否遵循同样规则尚需验证。此外,上皮细胞呈递抗原的分子机制,如是否依赖巨自噬加载MHC II,仍有待进一步研究。
总结与思考
这项研究把“抗原在哪里”变成了一个可量化的免疫学变量。同一细菌的同一表位,仅因是否被注入宿主上皮细胞胞质,就能产生数量级不同的CD4 T细胞反应,并决定记忆细胞是留在上皮前线还是退回淋巴组织。
对于黏膜疫苗和佐剂设计,这提示递送路径本身可能就是免疫原性的一部分。但一个开放问题仍然存在:在人类肠道中,能否安全、可控地把抗原送入上皮细胞胞质,并诱导出足够持久的TRM?这需要更多转化研究来回答。